

 歆语健康发布于 3月前
 收藏专家
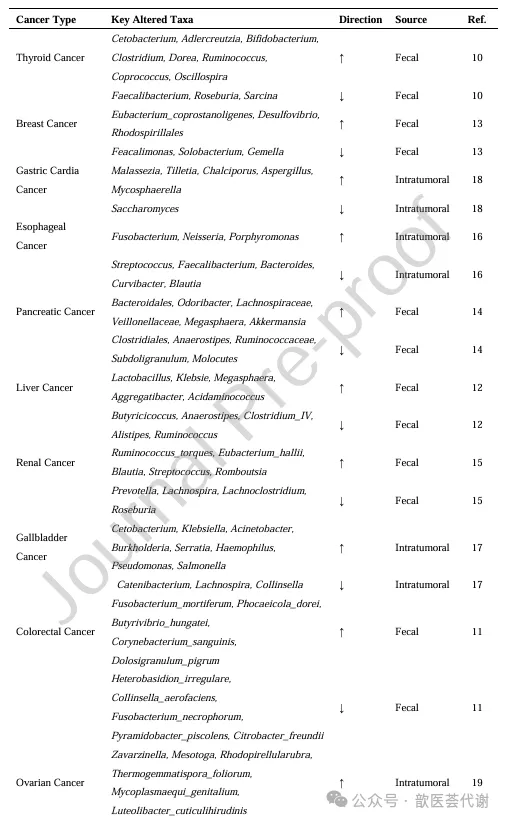
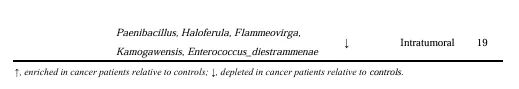
肥胖已成为全球性的公共卫生挑战,流行病学证据明确将其与至少13种恶性肿瘤的发病风险升高挂钩。然而,肥胖如何跨越单纯的能量过剩,在分子层面驱动成瘤过程,一直是医学界探索的核心课题。近年来,肠道微生态(Gut Microbiota)被公认为连接肥胖与癌症的关键纽带。它不仅是一个被动的定植群体,更是一个活跃的“代谢器官”,通过重塑宿主的脂质代谢微环境,在肿瘤的发生、演进及免疫逃逸中发挥桥梁作用。本文将深入探讨肠道菌群如何通过胆汁酸代谢、脂肪酸重编程及脂质信号分子,构建起肥胖相关癌症的代谢驱动机制。
“胆固醇-胆汁酸轴”:
菌群介导的促癌微环境重构
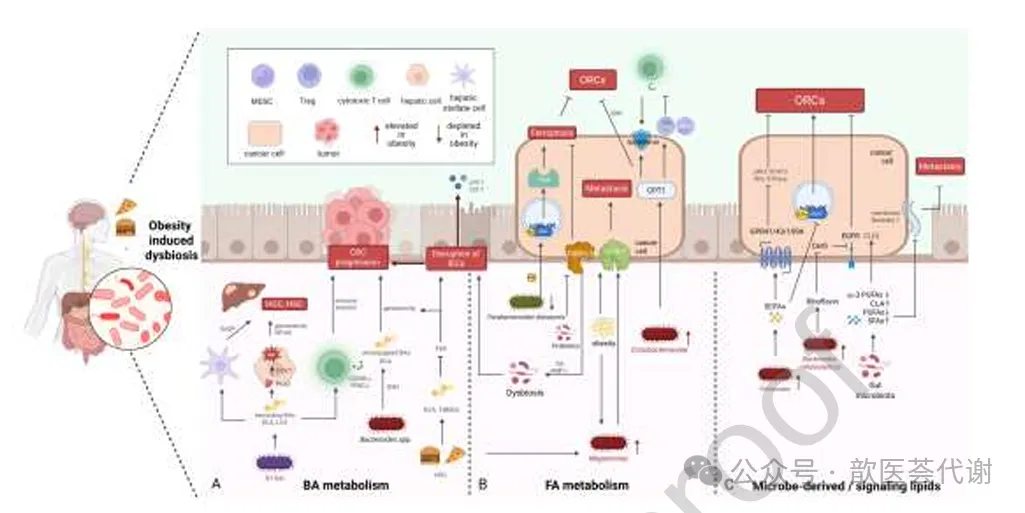
肝脏与肠道菌群共同构成了紧密的“胆固醇-胆汁酸轴”。在肥胖状态下,高脂饮食(High-Fat Diet, HFD)会导致肠道菌群结构发生特征性偏移,特别是产脱氧胆酸(Deoxycholic Acid, DCA)的革兰氏阳性菌显著增加。
这些微生物通过其表达的胆盐水解酶(Bile Salt Hydrolase, BSH)和7α-脱氢酶,将初级胆汁酸转化为具有基因毒性的次级胆汁酸(如DCA)。在肝癌模型中,DCA的蓄积不仅能直接损伤DNA,还能诱导肝星状细胞(Hepatic Stellate Cells, HSCs)产生衰老相关分泌表型(Senescence-Associated Secretory Phenotype, SASP),释放促炎和促瘤因子,从而加速肝细胞癌(HCC)的进展。此外,次级胆汁酸如DCA和牛磺-β-鼠胆酸(T-βMCA)会抑制法尼醇X受体(Farnesoid X Receptor, FXR)信号通路,破坏肠道上皮屏障的完整性,增加结直肠癌(CRC)的易感性。
在免疫层面,胆汁酸谱的改变在肝脏微环境中尤为关键。研究显示,初级胆汁酸可增加肝窦内皮细胞上CXCL16的表达,从而招募CXCR6+ NKT细胞发挥抗肿瘤作用;而肥胖诱导的菌群失调将平衡推向次级胆汁酸,下调CXCL16,导致肝脏免疫监视功能受损。
脂肪酸重编程:
从能量底物到致癌信号的转变
脂质代谢紊乱是肥胖最显著的特征之一。肠道菌群通过调节宿主代谢酶和转运蛋白的表达,深度参与了肿瘤细胞对脂肪酸的摄取、合成与氧化过程。
在肿瘤发生早期,从头脂肪酸合成(De novo lipogenesis)通常被上调,脂肪酸合成酶(Fatty Acid Synthase, FASN)是其中的核心节点。微生物信号可以调节这一节点:例如,Parabacteroides distasonis可能通过其色氨酸代谢产物吲哚-3-乙酸(IAA)激活AhR信号通路,进而影响脂质代谢并促进肿瘤细胞发生铁死亡(Ferroptosis)。尽管FASN通常与抗铁死亡相关,但菌群介导的脂质重塑可能通过改变膜脂成分,在特定情境下诱导细胞死亡,其具体因果机制仍是当前研究的热点。
相反,肥胖相关的菌群失调(如巨单胞菌属Megamonas的富集)会增强肿瘤细胞通过CD36和脂肪酸结合蛋白(FABPs)摄取外源脂肪酸的能力,这不仅支持了肿瘤的快速增殖,还增强了其对铁死亡的抵抗力。此外,高脂饮食富集的棒状杆菌科(Coriobacteriaceae)被证实能刺激CPT1-ERK信号通路,支持脂肪酸β-氧化,进而驱动结直肠癌的进展。这种从“底物供应”到“信号调控”的转变,揭示了菌群在肿瘤代谢重塑中的核心地位。
脂质介导的慢性炎症:
构建促癌的系统性微环境
肥胖诱导的慢性低度炎症(Chronic Low-Grade Inflammation, CLGI)是癌症发生的共同土壤。肠道菌群及其衍生的脂质成分,如脂多糖(Lipopolysaccharide, LPS)和脂磷壁酸(Lipoteichoic Acid, LTA),是这一炎症状态的重要触发器。
在肥胖背景下,肠道屏障功能受损(即“肠漏”),使得LPS等微生物相关分子模式(MAMPs)易位进入循环系统。LPS通过激活模式识别受体(如TLR4),触发全身性炎症级联反应,促进IL-6、TNF-α等促炎因子的释放。这种持续的炎症环境会诱导免疫抑制性微环境的形成,富集M2型巨噬细胞和髓系衍生抑制细胞(MDSCs),从而削弱T细胞的抗肿瘤监视。
值得注意的是,并非所有菌群脂质代谢产物都是促癌的。由厚壁菌门、拟杆菌门及放线菌门等共生菌群发酵膳食纤维产生的短链脂肪酸(Short-Chain Fatty Acids, SCFAs,如乙酸、丙酸、丁酸)具有显著的抗炎和抑癌作用。SCFAs通过结合G蛋白偶联受体(如GPR43)或作为组蛋白脱氢酶(HDAC)抑制剂,能够抑制促瘤炎症通路(如IL-6-JAK1-STAT3),并增强肠道上皮细胞间紧密连接蛋白(如Claudin-1)的表达,维持屏障稳态。
拓展阅读:
微生态与临床治疗的“双刃剑”效应
在探讨肠道微生态与肥胖相关癌症的关系时,其在临床治疗中的“双刃剑”作用不容忽视。一方面,菌群能显著影响化疗药物的毒性与疗效。例如,大肠杆菌产生的β-葡萄糖醛酸酶可将化疗药物伊立替康的无毒代谢物重新激活为有毒形式,引发严重腹泻,这提示菌群代谢是抗癌治疗安全性的重要考量因素。
另一方面,在免疫治疗领域,肥胖相关的代谢环境可能产生意想不到的积极效应。最新研究揭示了一个“FAD-PUFA轴”机制:微生物代谢产物黄素腺嘌呤二核苷酸(FAD)能以肥胖依赖的方式促进脂肪细胞的脂质重塑和多不饱和脂肪酸(PUFA)的生物合成。这些PUFA进一步增强了CD8+ T细胞的细胞毒性,从而提高了抗PD-1疗法的有效性。这种复杂性强调了在开发基于微生态的肿瘤干预策略时,必须充分考虑宿主的全身代谢状态与药物相互作用,实现真正的个体化精准医疗。
观点评述
综上所述,肠道微生态通过胆汁酸的二次转化、脂肪酸代谢通路的重编程以及炎症信号的触发,在肥胖与癌症之间架起了一座复杂的脂质代谢桥梁。此外,肠道“雌激素组”(Estrobolome)通过调节雌激素的再吸收,也深度参与了肥胖女性中乳腺癌和子宫内膜癌的发病过程。这一系列发现不仅深化了我们对肥胖致癌机制的理解,也为肿瘤的精准防治提供了新思路。未来,通过饮食干预、益生菌补充或纠正脂质代谢紊乱,有望成为肥胖相关癌症预防和治疗的重要辅助手段。
参考文献
1.Shi W, Song B, Xia S, Jia D. The role of gut microbiota in obesity-related cancers. Semin Cancer Biol. 2026;122:30-48. doi:10.1016/j.semcancer.2026.04.002
2.Huang S, Chen J, Cui Z, et al. Lachnospiraceae-derived butyrate mediates protection of high fermentable fiber against placental inflammation in gestational diabetes mellitus. Sci Adv. 2023;9(44):eadi7337. doi:10.1126/sciadv.adi7337
3.Wang HB, Wang PY, Wang X, Wan YL, Liu YC. Butyrate enhances intestinal epithelial barrier function via up-regulation of tight junction protein Claudin-1 transcription. Dig Dis Sci. 2012;57(12):3126-3135. doi:10.1007/s10620-012-2259-4